Restaurante Chino y Buffet Indio: ¿cuántas situaciones hay?
La pregunta de hoy
Si aprender es cambiar conexiones, ¿cómo guardamos lo nuevo sin borrar lo viejo?
¿Cómo guarda el cerebro lo nuevo sin borrar lo viejo? mapa de la clase
Parte I
Qué es una memoria
¿Dónde está guardada y cómo se escribe?
Tipos de memoria, amnesia, consolidación
Reconocer y recuperar
LTP y LTD: la regla de Hebb
Borrar memorias con luz
Engramas distribuidos: la red de Hopfield
Parte II
El problema
Si aprender cambia los pesos, ¿aprender es olvidar?
Capacidad: ¿cuántas memorias caben y qué cuesta cada una?
Interferencia catastrófica
Parte III
La solución del cerebro
Dos sistemas, uno rápido y otro lento
Place cells, decodificación y replay
Deriva representacional
Hipocampo + neocorteza: Káli & Dayan
¿Qué conviene consolidar? Go-CLS (Sun et al.)
Parte I · Qué es una memoria
¿Qué es la memoria?
¿Qué tipos de memoria conocen?
¿Qué es la amnesia?
Consolidación:
¿Qué comieron hoy?
¿Qué comieron hace 251 días?
¿Qué comieron en su último cumpleaños?
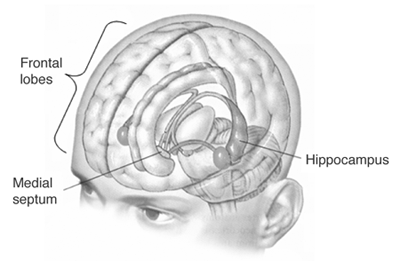
Hipocampo y corteza medial temporal
Éste es un Dax.
H.M. (Henry Molaison): sin hipocampo, sin memorias nuevas; las viejas, intactas.
Parte I · Qué es una memoria
¿Qué otros procesos están asociados a la memoria?
Reconocimiento: saber que un patrón sensorial ya se vio (el hipocampo “empata” la actividad de la corteza con algo guardado)
Recuperación: completar un patrón sensorial a partir de una pista parcial
Tipos de memoria:
No declarativa (hábitos, destrezas, condicionamiento)
Declarativa: episódica (qué, dónde, cuándo) y semántica (hechos, conceptos)
El hipocampo puede guardar información inmediatamente, con una sola presentación
Pregunta que casi nunca se hace: ¿cuántas memorias caben en N neuronas?
¿Cómo se llama esto?
¿Y esto?
Parte I · Qué es una memoria
Reconocimiento y recuperación
¿Reconocen alguno de estos objetos?
¿Cómo se llama?
Los “errores” de generalización son necesarios: nada vuelve a verse igual nunca
Reconocer = encontrar la memoria guardada más parecida; recuperar = completar el resto del patrón desde ella
Éste es un Dax.
↓
↓
↓
color
textura
forma
Parte I · Qué es una memoria
Bases fisiológicas de la memoria LTP y LTD: potenciación y depresión de sinapsis
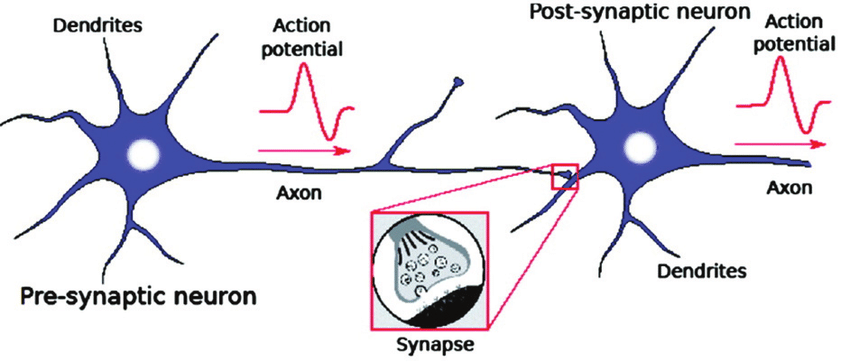
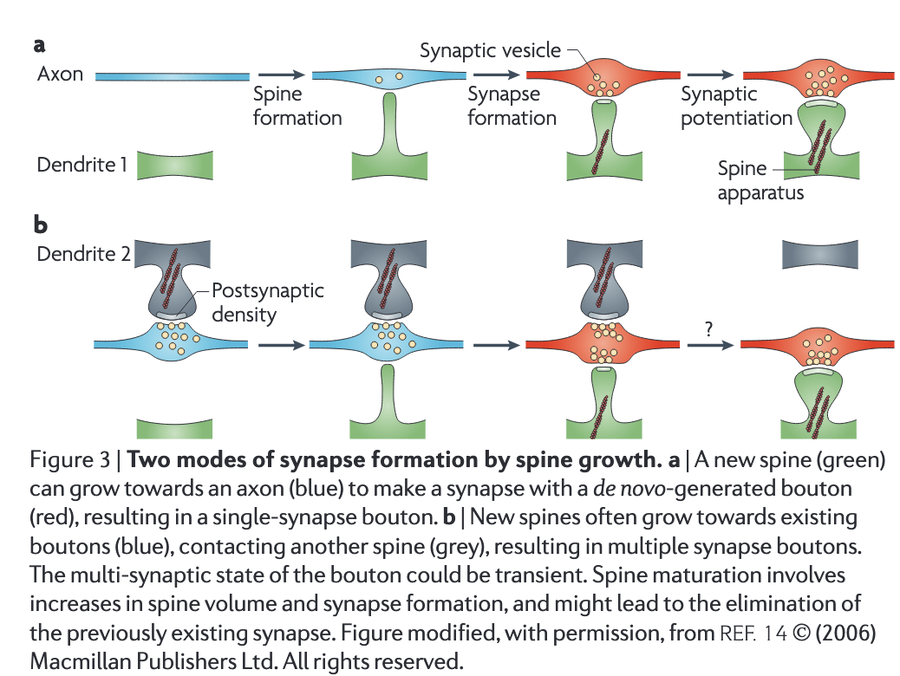
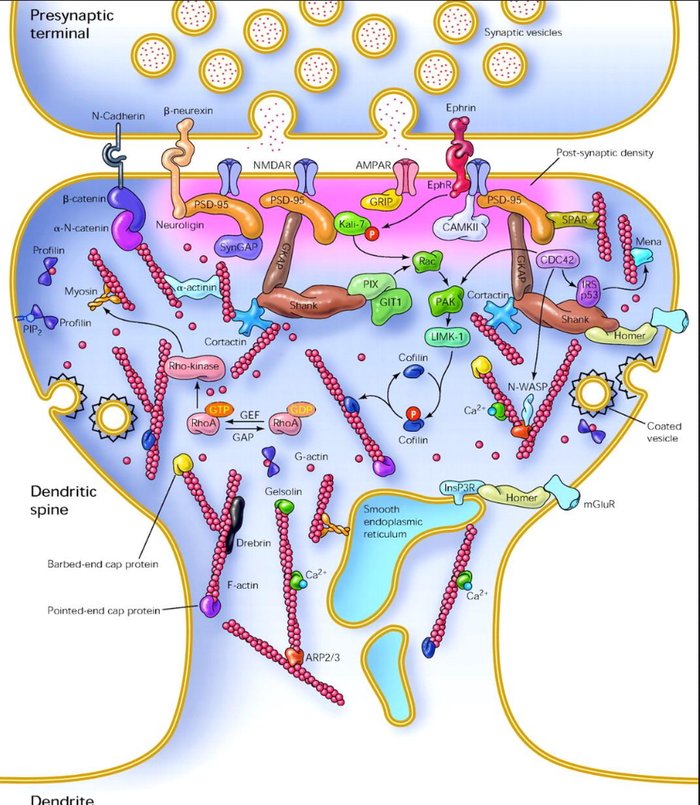
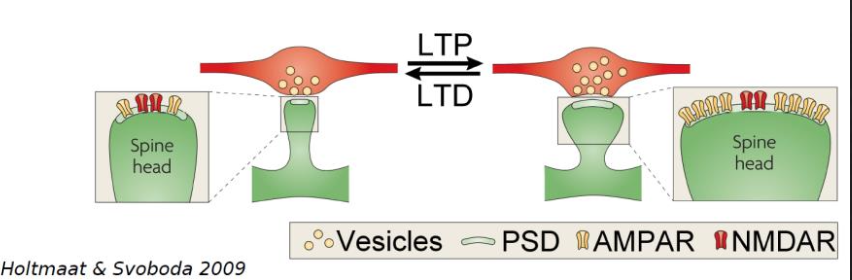
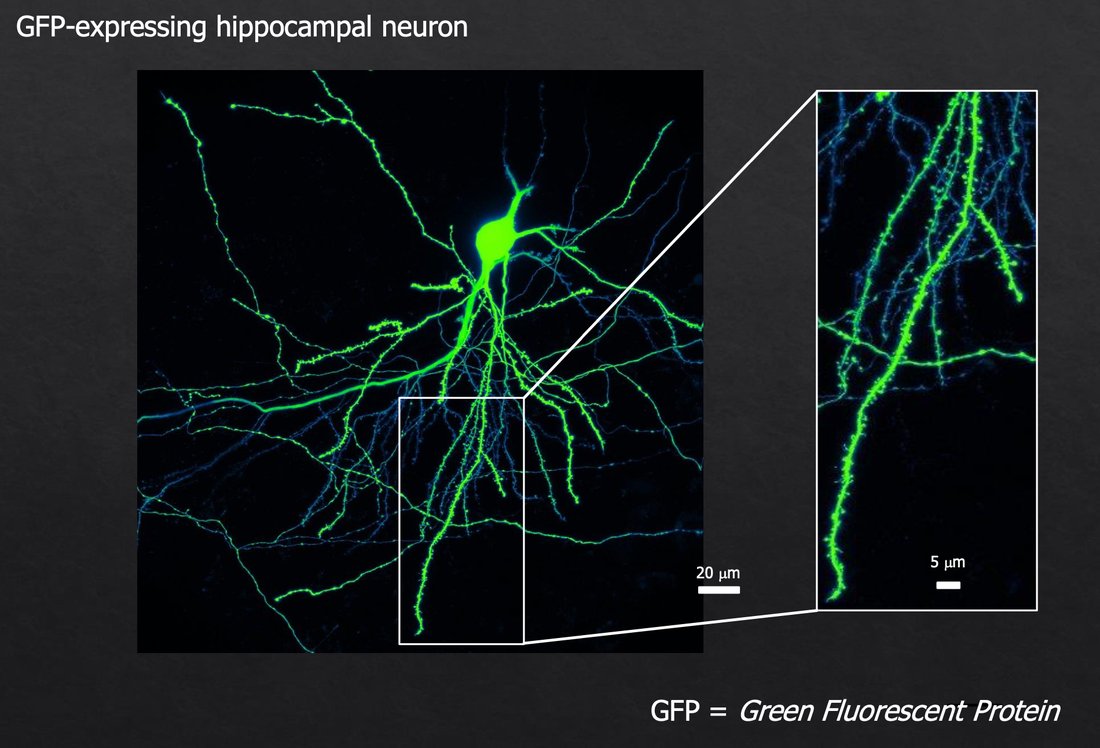
Una memoria es, físicamente, un cambio en la fuerza de las sinapsis: más receptores, espinas más grandes, nuevas sinapsis (LTP) o lo contrario (LTD).
Parte I · Qué es una memoria
Plasticidad sináptica: LTP y LTD
Holtmaat & Svoboda (2009).
Parte I · Qué es una memoria
“Las neuronas que disparan juntas se conectan”: Hebb y STDP interactivo
Δw = η · f(Δt), Δt = tpost − tpre
Una sinapsis pre → post con peso w. Cada vez que las dos disparan cerca en el tiempo, w cambia según la curva f(Δt) (Bi & Poo, 1998)
Pre antes que post (Δt > 0): la entrada pudo causar el disparo → la sinapsis se refuerza (LTP, azul)
Post antes que pre (Δt < 0): la entrada llegó tarde, no fue causa → se debilita (LTD, rojo)
Mira la animación: 30 pares pre→post suben w; luego 30 pares post→pre lo bajan. El punto sobre la curva marca el Δt en uso
Prueba
Bi, G.-Q., & Poo, M.-M. (1998). Synaptic modifications in cultured hippocampal neurons. J. Neurosci., 18, 10464–10472.
Parte I · Qué es una memoria
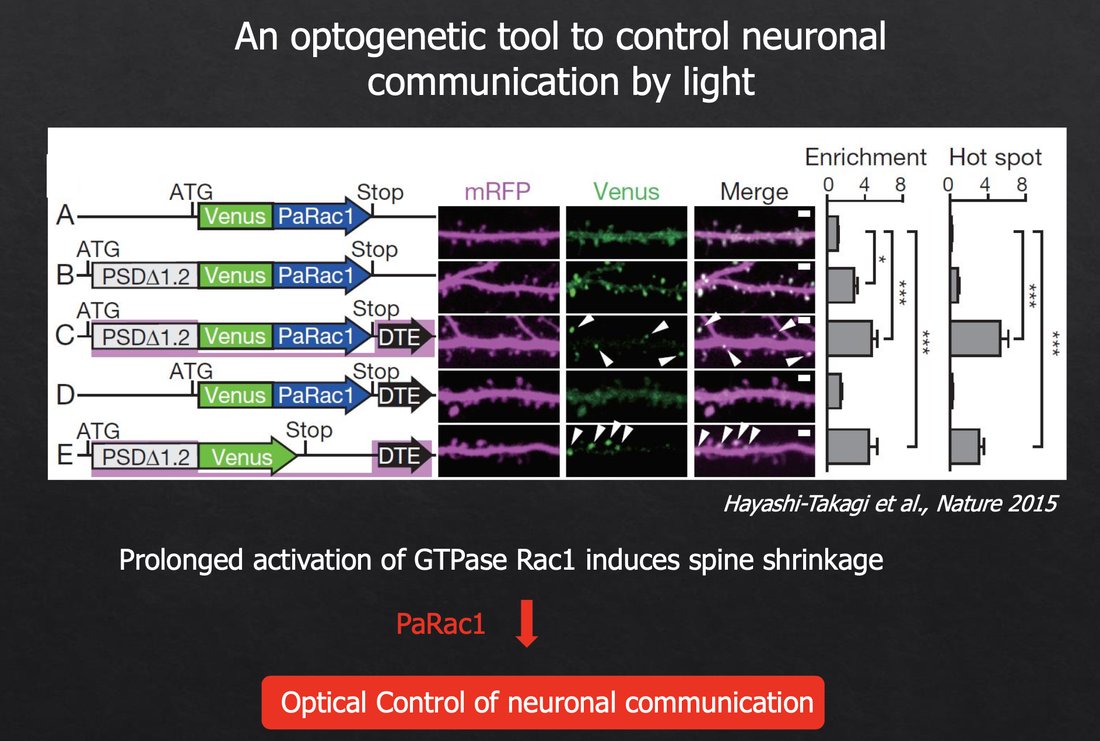
Borrar una memoria con luz (1): la herramienta Hayashi-Takagi et al. (2015)
La idea: si una memoria son espinas dendríticas que crecieron durante el aprendizaje, borrar esas espinas debería borrar esa memoria y nada más
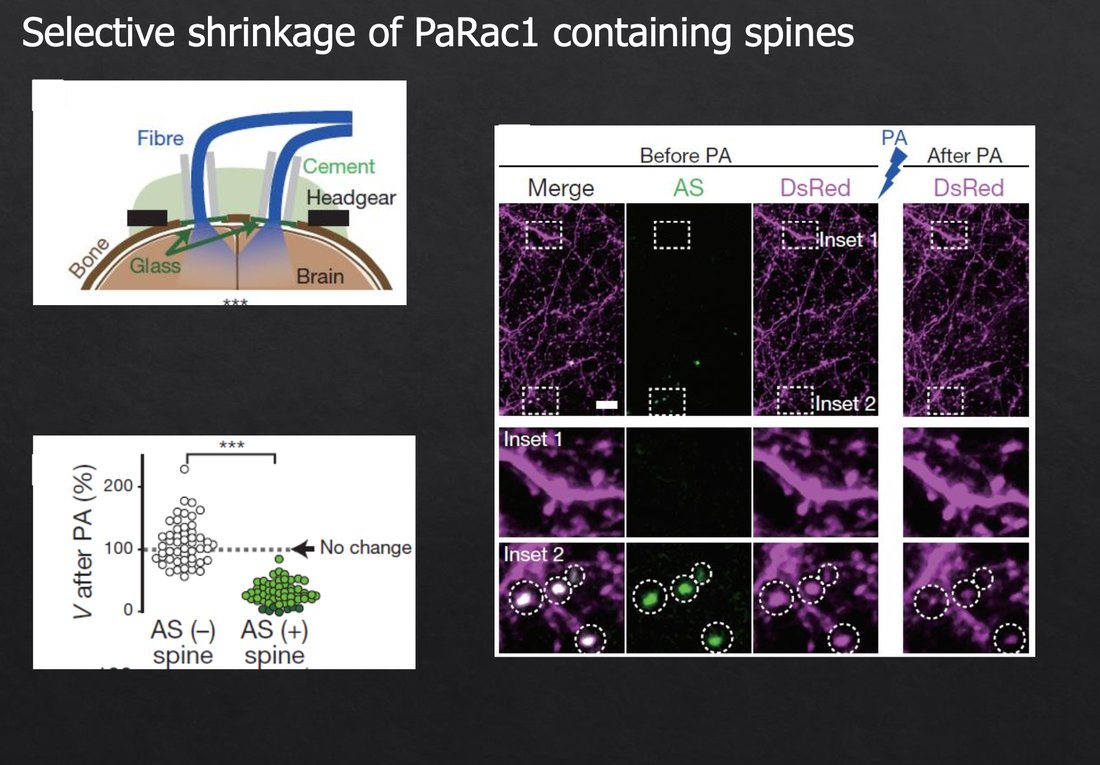
Paso 1 — marcar: una proteína (AS-PaRac1) se expresa solo en las espinas que están siendo potenciadas, y lleva una etiqueta fluorescente. Al terminar el entrenamiento, las espinas “nuevas” de ese aprendizaje brillan
Paso 2 — borrar: PaRac1 es una versión de Rac1 (que encoge espinas) activada por luz azul. Iluminar la corteza encoge solo las espinas marcadas; las demás quedan intactas
Control: en espinas con AS(−) la luz no hace nada (el volumen no cambia)
Hayashi-Takagi, A., et al. (2015). Labelling and optical erasure of synaptic memory traces in the motor cortex. Nature, 525, 333–338.
Parte I · Qué es una memoria
Borrar una memoria con luz (2): el experimento
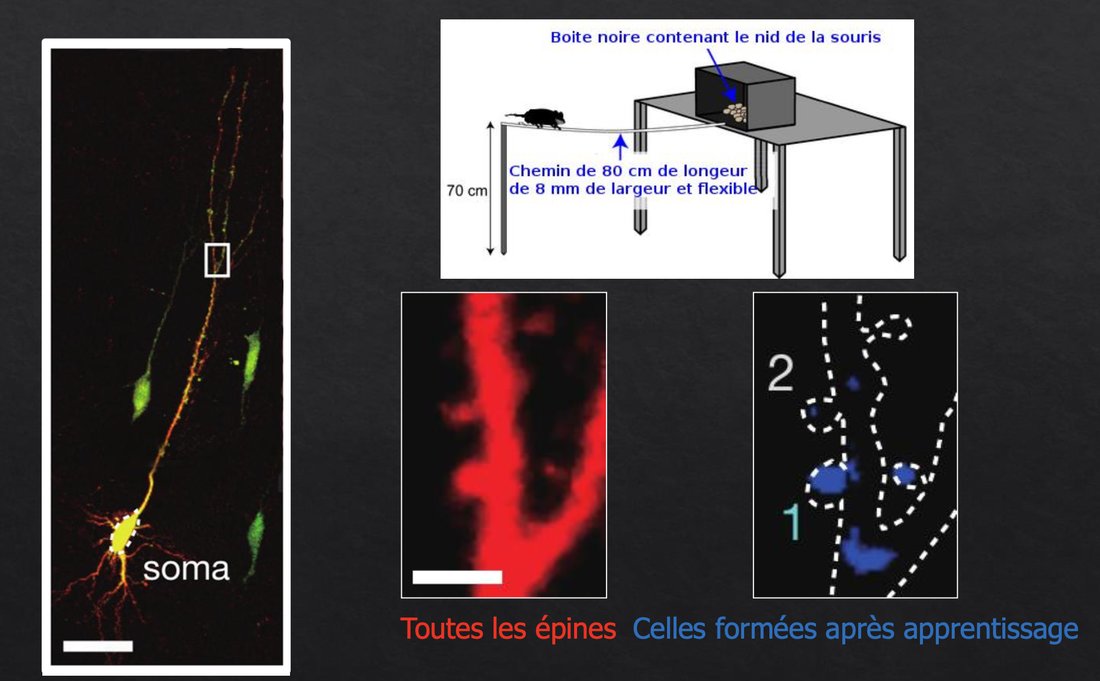
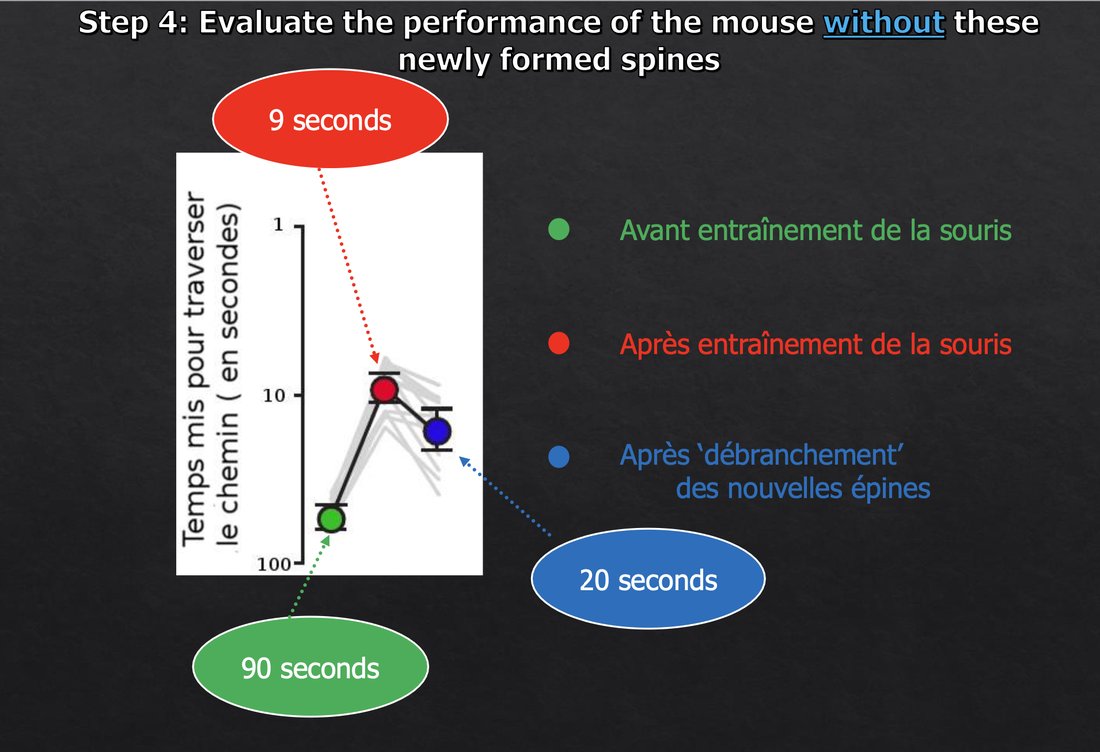
La tarea: el ratón aprende a caminar sobre una barra giratoria (rotarod). Antes tarda ~90 s en cruzar; después, ~9 s
Durante el aprendizaje aparecen espinas nuevas en la corteza motora, y quedan marcadas (azul, entre todas las espinas en rojo)
Luz: encogen solo las espinas marcadas. El ratón vuelve a tardar ~20 s: la destreza se perdió, aunque camina y ve perfectamente
Controles: si se iluminan espinas marcadas por otra tarea, la destreza no se afecta; si se marca sin iluminar, tampoco
Conclusión: la memoria de esa destreza está en ese conjunto de sinapsis potenciadas: un engrama físico, localizable y borrable
Hayashi-Takagi, A., et al. (2015). Nature, 525, 333–338.
Parte I · Qué es una memoria
Engramas: memorias distribuidas
Memorias distribuidas en:
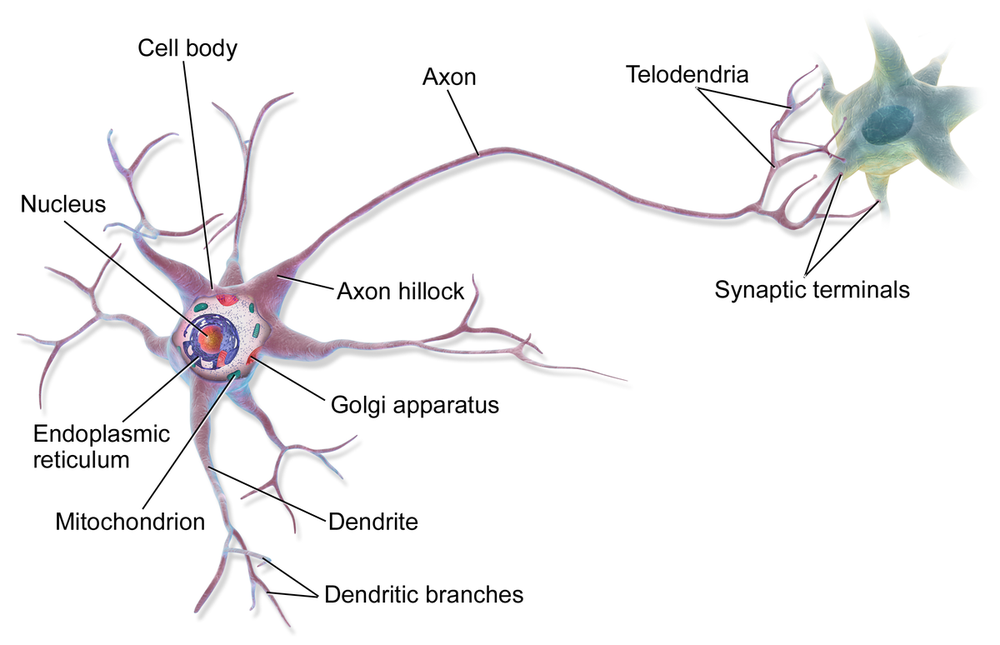
Conexiones entre neuronas
Patrones de actividad neuronal
Ninguna neurona “es” la memoria; el engrama es el conjunto de sinapsis que, juntas, reconstruyen el patrón
La misma red guarda muchos engramas superpuestos
Parte I · Qué es una memoria
Cómo una red guarda y recupera un patrón: la red de Hopfield animación
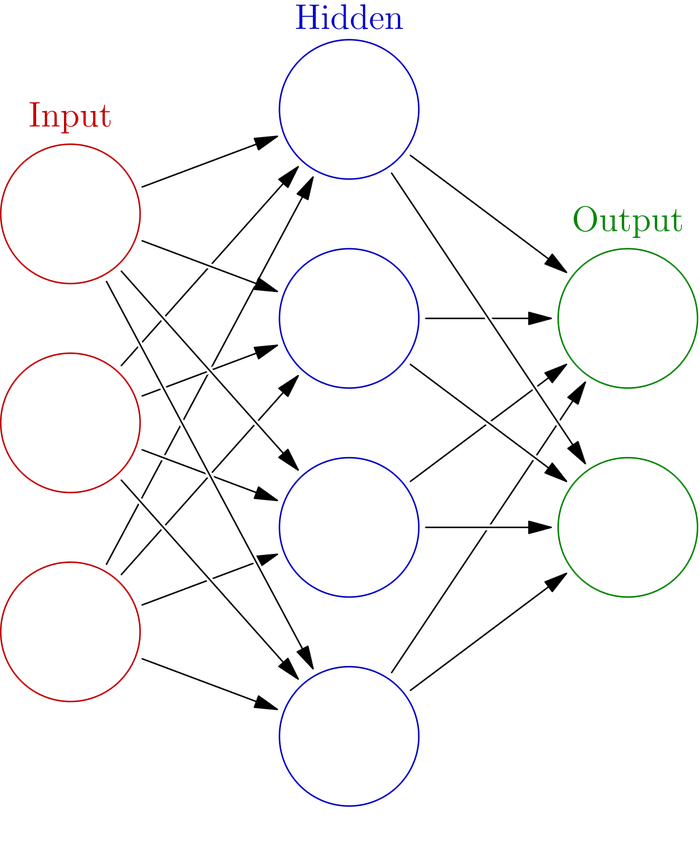
Red: N neuronas binarias (activa / inactiva), todas conectadas con todas por pesos simétricos wij
Guardar (Hebb): por cada par, wij += ξiξj: +1 si las dos estaban igual, −1 si no. Varias memorias se suman en los mismos pesos
Recuperar: dada una pista (patrón dañado), cada neurona mira a las demás: hi = Σj wijsj; si hi > 0 se activa, si no se apaga
Cada actualización baja la energía; el estado rueda hasta el fondo del valle más cercano: la memoria guardada es un atractor
Hopfield, J. J. (1982). Neural networks and physical systems with emergent collective computational abilities. PNAS, 79, 2554–2558.
Parte I · Qué es una memoria
Un engrama que se puede ver: 100 neuronas, varias memorias interactivo
Qué vas a ver: lo mismo que en la animación, pero con 100 neuronas (cuadrícula 10×10; azul = activa) y varias memorias guardadas en los mismos pesos
Pista: una memoria con ruido (neuronas invertidas) o con la mitad borrada (gris = desconocido)
Recuperar: las neuronas se actualizan una por una y la cuadrícula “cae” a la memoria más parecida
Traslape (barras): qué tanto se parece el estado actual a cada memoria. Antes de recuperar, la barra más alta es el reconocimiento; al final, 1.0 es la recuperación
Prueba
Parte II · El problema
¿Cuántas memorias caben en N neuronas? interactivo
La cuenta: al recuperar la memoria 1, lo que recibe cada neurona es hi = señal + ruido. La señal vale 1 (viene de la memoria 1). El ruido es la suma de las otras K−1 memorias, que tiran en direcciones al azar: una campana de ancho √(K/N)
Error: la neurona se equivoca cuando el ruido supera a la señal (la cola roja que cruza el cero)
La catástrofe: cada neurona equivocada aumenta el ruido de las demás. Por debajo de K/N ≈ 0.14 los pocos errores se corrigen solos; por encima, se multiplican y la red cae en un estado espurio
Mueve K/N y mira cómo la campana se ensancha; “Medir” comprueba la predicción en una red de 100 neuronas
Prueba
Amit, D. J., Gutfreund, H., & Sompolinsky, H. (1985). Storing infinite numbers of patterns in a spin-glass model of neural networks. Phys. Rev. Lett., 55, 1530.
Parte II · El problema
Cada memoria nueva tiene un costo
Para las memorias que ya estaban: cada memoria nueva es ruido para todas las demás. Las cuencas de atracción se encogen → hace falta una pista más limpia para recuperar, y la recuperación tarda más barridos
Para la red: cada memoria toca los N² pesos. No hay “cajones”: todo se guarda encima de todo. Por eso la capacidad crece con N, no con el número de sinapsis disponibles “vacías”
Mantenimiento: sostener una sinapsis potenciada cuesta energía y síntesis de proteínas continua; las espinas que no se usan se podan. Guardar no es gratis ni permanente
Dos remedios que usa el cerebro: (1) separar patrones antes de guardarlos (giro dentado: pocas neuronas activas, patrones casi ortogonales → muchas más memorias caben); (2) no guardar todo en el mismo sitio: un almacén rápido de capacidad finita y otro lento que extrae lo que se repite. De eso trata el resto de la clase
…¿aprender significa también cambiar lo aprendido? ¿Aprender = olvidar?
En una red con pesos compartidos, entrenar la tarea B mueve los mismos pesos que codificaban la tarea A
La solución estadística: intercalar A y B. Pero la experiencia no llega intercalada; llega en orden
McCloskey, M., & Cohen, N. J. (1989). Catastrophic interference in connectionist networks. Psychology of Learning and Motivation, 24, 109–165.
Parte II · El problema
Interferencia catastrófica: aprender B borra A animación
Qué vas a ver: una red simple aprende la tarea A hasta acertar todo. Luego aprende la tarea B sin volver a ver A. Mira qué le pasa a la exactitud en A (azul)
Por qué pasa: cada corrección para B mueve los mismos pesos que codificaban A. No hay un “borrador”: basta con seguir aprendiendo
El remedio: repasar. Con una fracción r de ensayos de A intercalados durante B, la red conserva las dos (a cambio, B tarda más). Esto es exactamente lo que hará el hipocampo con el replay
Prueba
Parte III · La solución del cerebro
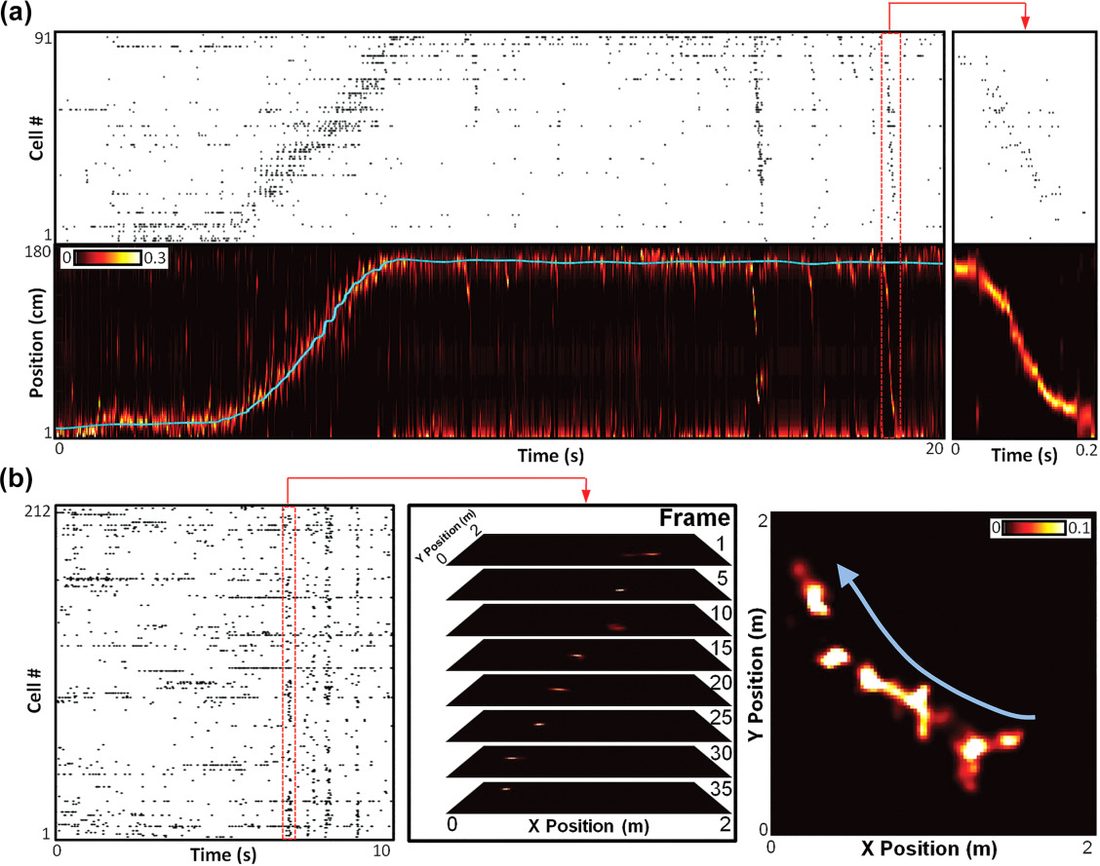
“Place cells” en el hipocampo: del desorden al mapa
Registramos muchas neuronas de CA1 mientras la rata corre. Tal como salen del electrodo, los disparos parecen un desorden
Pero cada neurona dispara en un lugar del ambiente: su campo de lugar
Si usamos ese conocimiento (ordenarlas por la posición de su campo), el desorden se vuelve una secuencia que recorre la pista
Y al revés: conociendo los campos, la actividad del conjunto nos dice dónde está el animal: podemos decodificar la posición (clase 3)
Dentro de cada ciclo theta (~8 Hz) la secuencia se repite comprimida: “theta sequences”
Leer la posición en los disparos: decodificador Bayesiano y replay interactivo
Modelo: cada célula dispara (Poisson) con tasa λi(x) = base + pico·Gaussiana. El decodificador (clase 3) usa los disparos de los últimos 250 ms: P(x | n) ∝ Πi Poisson(ni | λi(x)·Δt)
Color: en cada columna, rojo = posición más probable, blanco = 0 (normalizado al máximo). Muestra dónde cree estar el decodificador
¿Es bueno?: el error |x̂ − x| (promedio en el resumen). Al azar ≈ 67 cm; unos pocos cm = el código funciona
Las células llegan desordenadas → “Ordenar”. “Otras células” cambia qué neuronas registramos: con huecos en la pista el decodificador empeora ahí
Prueba
Parte III · La solución del cerebro
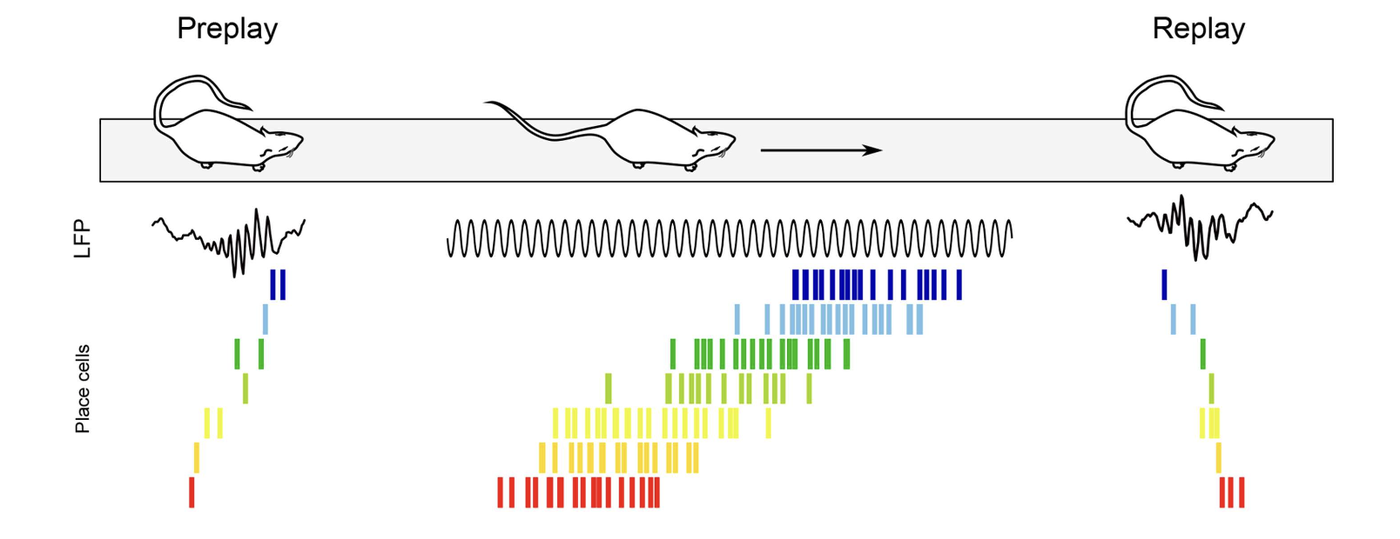
Replay ¿reconocimiento y recuperación de memorias espontáneos?
Ocurre en periodos de descanso y durante el sueño de ondas lentas
El tiempo del replay está comprimido (segundos de recorrido en ~100 ms)
Frecuentemente la secuencia está invertida (reverse replay), sobre todo justo después de una recompensa
También hay preplay: secuencias de un recorrido que todavía no ha ocurrido
Es exactamente lo que acabamos de hacer con el decodificador: leer una trayectoria a partir de los disparos, sin que el animal se mueva
Pfeiffer, B. E. (2020). The content of hippocampal “replay”. Hippocampus, 30(1), 6–18.
Parte III · La solución del cerebro
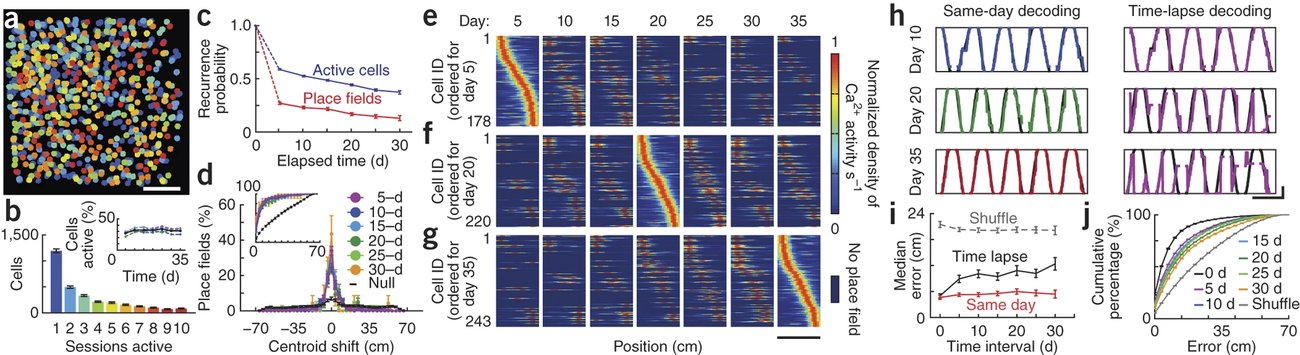
Deriva representacional representational drift
Siempre encontramos place cells…
…pero no son las mismas de un día a otro: cada día, parte de las células cambia o pierde su campo
¿Está relacionado con el aprendizaje continuo (la red sigue cambiando pesos)?
¿O con algún otro proceso? El mapa en conjunto sigue siendo legible aunque las células individuales roten
Ziv, Y., et al. (2013). Long-term dynamics of CA1 hippocampal place codes. Nat. Neurosci., 16, 264–266.
Parte III · La solución del cerebro
Deriva: la posición siempre se puede decodificar, pero el código cambia interactivo
Modelo: 60 células; cada día una fracción p pierde su campo o lo cambia de lugar
Izquierda: las mismas células el día 1 y el día j, ordenadas por sus campos de uno de los dos días. Ordenadas por el día 1, el día j se ve revuelto; ordenadas por el día j, aparece su propia diagonal. Los dos días tienen un mapa; lo que cambió es el código
Matriz: decodificador entrenado el día i, probado el día j. La diagonal siempre funciona; lejos de ella, el desempeño cae en ambas direcciones
Curva: desempeño promedio vs. |Δ días|. Moraleja: la memoria es la relación entre muchas células y un lector que se actualiza
Prueba
Parte III · La solución del cerebro
Un modelo simple de memoria: la idea Káli & Dayan (2004)
El problema: la corteza aprende lento (muchas repeticiones) y sufre interferencia; pero un episodio ocurre una sola vez. ¿Cómo lo guardamos?
La analogía: el hipocampo es una libreta donde apuntamos cada episodio de una vez; la corteza es el libro de texto que se reescribe lentamente a partir de lo apuntado
Replay = releer la libreta por la noche para ir pasando lo apuntado al libro, intercalado con todo lo demás (evita la interferencia catastrófica)
Como las representaciones corticales cambian con el tiempo (deriva), la libreta debe seguir “hablando el mismo idioma” que el libro: también se actualiza
Káli, S., & Dayan, P. (2004). Off-line replay maintains declarative memories in a model of hippocampal-neocortical interactions. Nat. Neurosci., 7, 286–294.
Parte III · La solución del cerebro
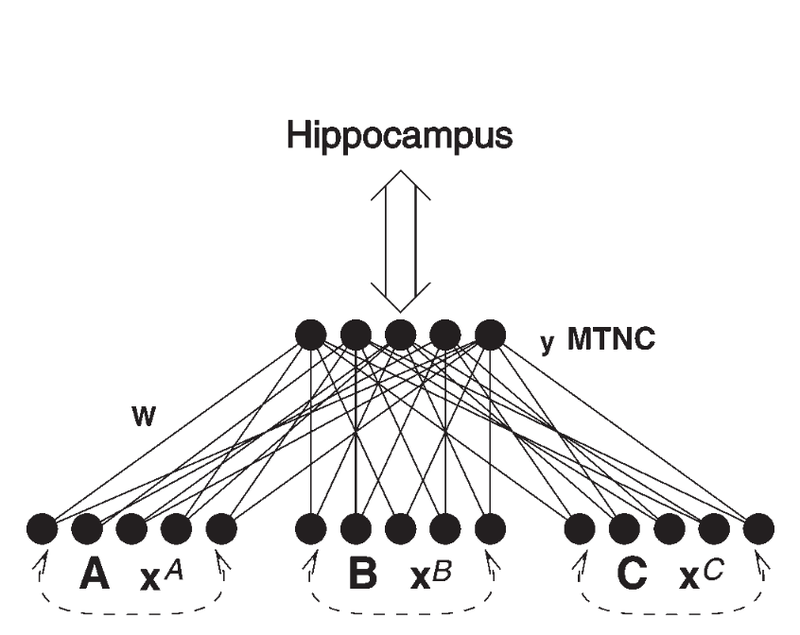
Káli & Dayan: la arquitectura, pieza por pieza
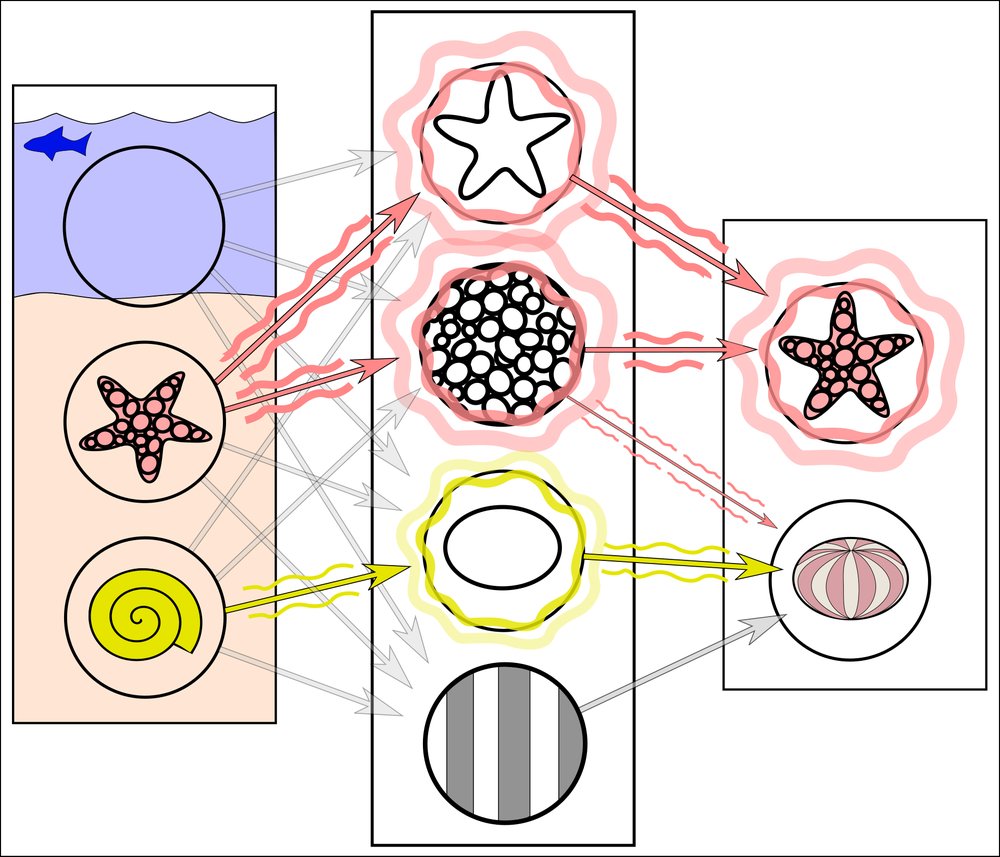
Áreas sensoriales A, B, C (abajo): tres “modalidades”. Un episodio es un patrón de actividad en las tres a la vez (qué vi, qué oí, dónde)
MTNC (capa y): la neocorteza medial temporal, conectada con las tres áreas por pesos W que aprenden por Hebb, lentamente. Es el “libro”: guarda asociaciones entre áreas
Hipocampo (arriba): guarda el patrón de MTNC de cada episodio inmediatamente, como un atractor (nuestra red de Hopfield). Es la “libreta”
Dos formas de recordar:
De abajo a arriba: llega una pista parcial (solo A) y la red completa B y C a través de MTNC
De arriba a abajo: el hipocampo reactiva un patrón de MTNC y este reconstruye A, B y C: eso es el replay
Káli & Dayan (2004). Nat. Neurosci., 7, 286–294.
Parte III · La solución del cerebro
Káli & Dayan: qué ve la corteza cada día
Episodios: 10 patrones posibles por área → 1 000 combinaciones; cada episodio nuevo es una de ellas, al azar. Son arbitrarios: ninguna regla los predice
Regularidades semánticas: además, los patrones de A y C vienen acoplados (si en A sale el 3, en C sale el 3): 100 parejas que se repiten una y otra vez. Eso sí tiene estructura
Lo que ve la corteza, por cada 1 000 presentaciones: 100 vienen del mundo (áreas sensoriales) y 900 del hipocampo reactivando episodios guardados
Medida: cada cierto tiempo se da una pista parcial de un episodio y se pregunta si la red recupera el patrón completo: “porcentaje recordado”
900 replay
100 exp.
900 replay
100 exp.
900 replay
100 exp.
El 90 % de lo que la corteza “ve” no es el mundo: es el hipocampo contándole el mundo de nuevo.
Káli & Dayan (2004). Nat. Neurosci., 7, 286–294.
Parte III · La solución del cerebro
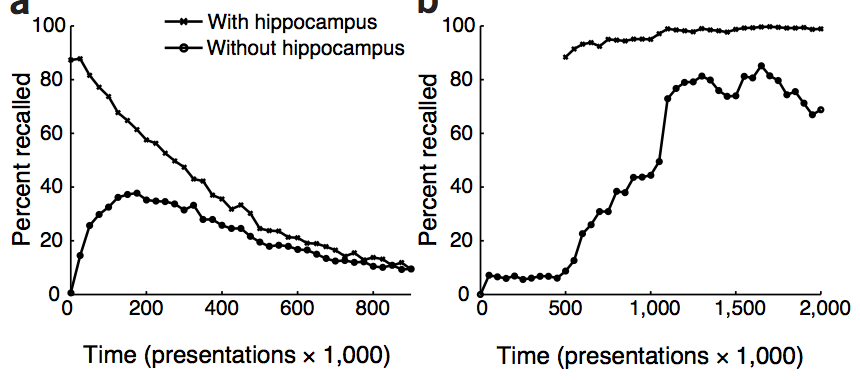
Káli & Dayan: cómo leer las curvas
Eje x: edad del episodio (en presentaciones). Eje y: cuántos episodios de esa edad se recuperan desde una pista parcial
(a) Episodios, con hipocampo (cruces): recién ocurridos se recuerdan al ~90 %; después el recuerdo decae conforme nuevos episodios interfieren
(a) Sin hipocampo (círculos): una sola presentación no basta; el recuerdo arranca bajo. A la larga las curvas convergen: lo que queda es lo que la corteza consolidó
(b) Regularidades semánticas: con hipocampo se aprenden rápido y se quedan; sin hipocampo también, solo que mucho más despacio. Lo que se repite no necesita libreta
Es el perfil de H.M.: amnesia anterógrada (sin episodios nuevos), memoria semántica que aún puede crecer lentamente
Consolidación: la libreta le dicta al libro interactivo
Para qué sirve: reproducir la Fig. 2a de Káli & Dayan con los ingredientes mínimos y ver qué papel juega cada uno
Corteza: la red de la interferencia (regla delta, lenta). Hipocampo: una libreta que guarda cada episodio de golpe pero solo los últimos M. Replay: cada paso reproduce R episodios de la libreta a la corteza
Recordar = el hipocampo todavía lo tiene (zona sombreada) o la corteza reproduce bien sus 6 bits (azar ≈ 1.5 %)
Compara los presets: con/sin hipocampo, hipocampo sin replay, mucho replay
Prueba
Parte III · La solución del cerebro
La importancia de las reactivaciones (replay)
Conforme se aprenden cosas, se cambian los pesos de las conexiones corticales
Esos cambios interfieren con lo aprendido antes (la deriva representacional es su huella)
Para que las memorias episódicas puedan seguir siendo elicitadas desde el hipocampo, éste debe actualizarse y mantener registro del código cortical actual
El replay hace dos cosas a la vez: le enseña a la corteza, y re-alinea al hipocampo con una corteza que cambia
Pregunta pendiente: ¿conviene consolidar todo? Eso es lo que resuelve el siguiente modelo
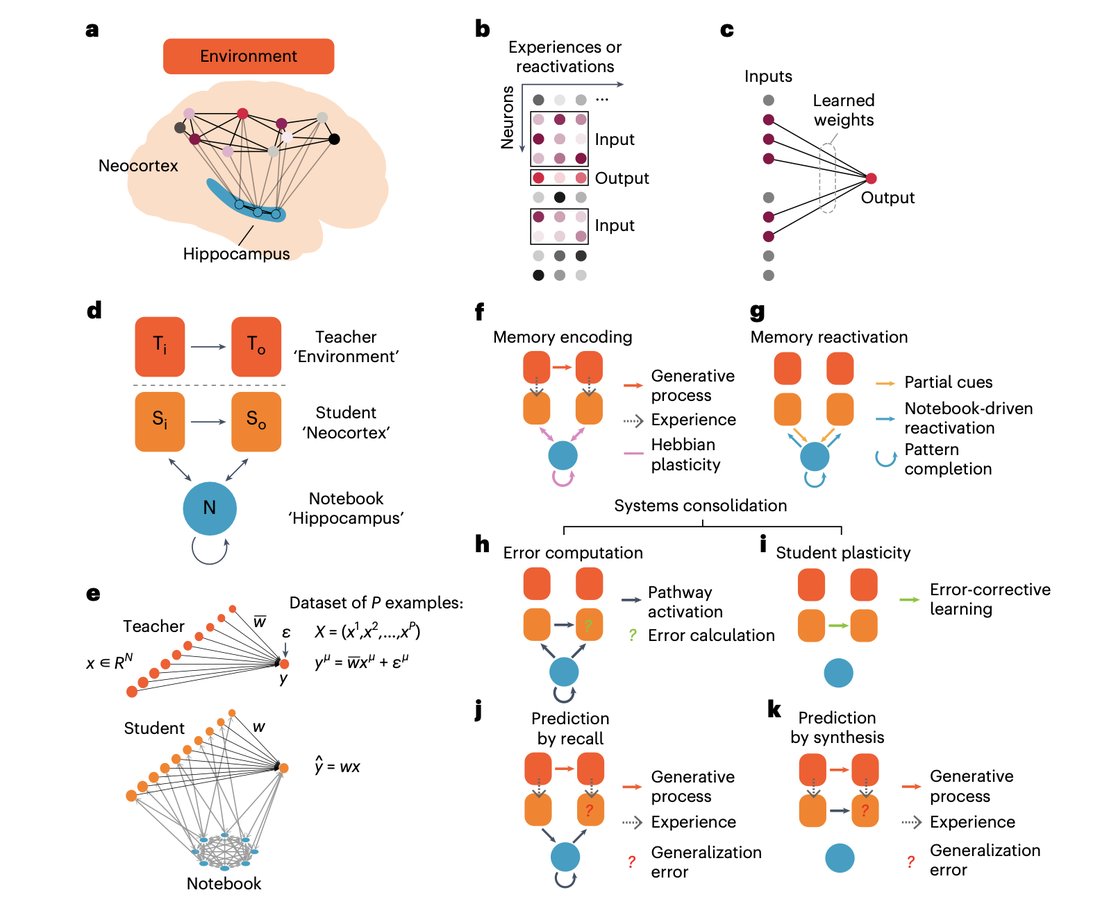
Káli & Dayan (y la teoría CLS clásica) asumen que la meta es pasar todo de la libreta al libro. Sun et al. preguntan: ¿y si la meta del libro es generalizar, es decir, predecir bien experiencias nuevas?
Mismo esquema, nombres nuevos:
Maestro (teacher) = el ambiente: produce pares entrada → salida con una parte predecible y una parte de ruido. Su parámetro clave es la relación señal/ruido (SNR)
Estudiante (student) = la neocorteza: aprende por gradiente, lentamente
Libreta (notebook) = el hipocampo: una red de Hopfield dispersa que guarda cada ejemplo de golpe y puede reactivarlo
Dos errores: de memoria (Em: sobre los ejemplos vividos) y de generalización (Eg: sobre ejemplos nuevos del mismo maestro)
Consolidar = el estudiante entrena con las reactivaciones de la libreta. La pregunta: ¿hasta cuándo?
Sun et al. (2023), Fig. 1: maestro–estudiante–libreta.
Sun, W., Advani, M., Spruston, N., Saxe, A., & Fitzgerald, J. E. (2023). Organizing memories for generalization in complementary learning systems. Nat. Neurosci., 26, 1438–1448.
Parte III · La solución del cerebro
Maestro, libreta y estudiante en acción animación
1 · Vigilia: el maestro produce un ejemplo (entrada x, salida y = señal + ruido). La libreta lo graba de golpe como un patrón disperso; el estudiante apenas lo ve
2 · Sueño: la libreta reactiva sus patrones al azar (completa cada uno desde una pista) y el estudiante entrena con ellos. Repite muchas veces
3 · Las curvas: Em (qué tan bien reproduce los ejemplos vividos) y Eg (qué tan bien predice ejemplos nuevos). Con ambiente predecible las dos bajan juntas. Con ambiente ruidoso, Em sigue bajando pero Eg toca fondo y vuelve a subir: el estudiante está memorizando ruido
4 · Go-CLS: detener el replay en el mínimo de Eg. Lo que no se consolidó se queda en la libreta
Sun et al. (2023). Nat. Neurosci., 26, 1438–1448.
Parte III · La solución del cerebro
Go-CLS: qué cambia respecto a Káli & Dayan
Lección 1 — consolidar es aprender a predecir, no copiar. El libro no es una copia lenta de la libreta: es un modelo del mundo. Su éxito se mide en experiencias nuevas (Eg), no en las vividas (Em)
Lección 2 — lo impredecible no se puede generalizar. La parte de ruido de una experiencia (dónde dejé las llaves hoy) no tiene regla. Si la corteza la memoriza, se sobreajusta y predice peor lo nuevo
Lección 3 — por eso hay que saber parar. La cantidad óptima de replay depende de cuán predecible es el ambiente (SNR): mucho para lo regular, poco para lo arbitrario. Es early stopping con el hipocampo como regulador
Lección 4 — algunas memorias deben quedarse en la libreta para siempre. Un recuerdo arbitrario se guarda completo en el hipocampo y nunca se consolida del todo: dependencia hipocampal permanente
Káli & Dayan → Go-CLS, en una tabla
Káli & Dayan 2004Sun et al. 2023metamantener los episodios recuperablesminimizar el error de generalizaciónqué se replayatodo, uniformementeregulado por predictibilidad (SNR)cuántoindefinidamentehasta el mínimo de Egmemorias arbitrariasse consolidan (y se degradan)se quedan en el hipocampoamnesia retrógradagraduadagraduada o plana, según la memoria
Sun et al. (2023). Nat. Neurosci., 26, 1438–1448.
Parte III · La solución del cerebro
Go-CLS: qué predice y qué explica
Amnesia retrógrada: para memorias con regularidad, graduada (las viejas sobreviven a la lesión porque ya pasaron al libro); para memorias arbitrarias, plana: se pierden todas, viejas y nuevas. El laberinto de Morris (posiciones arbitrarias) depende del hipocampo para siempre
Generalizadores vs. discriminadores: animales que generalizan el miedo entre contextos dependen menos del hipocampo para la memoria original. Lo que cambia entre individuos es cuánta predictibilidad extraen
Conectividad en fMRI (Sweegers et al., 2014): asociaciones cara–lugar con regla aumentan la conexión corteza–corteza; las arbitrarias la disminuyen
Lo que falta: un “supervisor” que estime la predictibilidad y regule cuánto replay recibe cada memoria. Candidato natural: el error de predicción (clase 4)
Sun et al. (2023). Nat. Neurosci., 26, 1438–1448. Sweegers et al. (2014). J. Neurosci., 34, 7936–7944.
Síntesis: aprender sin olvidar
Una memoria es un cambio de pesos (LTP/LTD, espinas): se puede ver, marcar y borrar con luz
Los engramas son distribuidos: patrones que una red recurrente completa desde una pista (reconocer ≈ traslape; recuperar ≈ caer al atractor)
Hay un límite y un costo: K ≈ 0.14 N en Hopfield; cada memoria nueva es ruido para las demás, y aprender B interfiere con A en cualquier red de pesos compartidos
La solución es arquitectónica: un sistema rápido de alta capacidad por poco tiempo (hipocampo) que repite, intercalado y comprimido, a un sistema lento que generaliza (corteza)
Y selectiva: conviene consolidar lo predecible; lo arbitrario se queda en la libreta
Nada queda quieto: las representaciones derivan, y el replay mantiene alineados a los dos sistemas
Referencias
Amit, D. J., Gutfreund, H., & Sompolinsky, H. (1985). Storing infinite numbers of patterns in a spin-glass model of neural networks. Phys. Rev. Lett., 55, 1530.
Bi, G.-Q., & Poo, M.-M. (1998). Synaptic modifications in cultured hippocampal neurons. J. Neurosci., 18, 10464–10472.
Drieu, C., & Zugaro, M. (2019). Hippocampal sequences during exploration: mechanisms and functions. Front. Cell. Neurosci., 13, 232.
Hayashi-Takagi, A., et al. (2015). Labelling and optical erasure of synaptic memory traces in the motor cortex. Nature, 525, 333–338.
Hebb, D. O. (1949). The Organization of Behavior. Wiley.
Holtmaat, A., & Svoboda, K. (2009). Experience-dependent structural synaptic plasticity in the mammalian brain. Nat. Rev. Neurosci., 10, 647–658.
Hopfield, J. J. (1982). Neural networks and physical systems with emergent collective computational abilities. PNAS, 79, 2554–2558.
Káli, S., & Dayan, P. (2004). Off-line replay maintains declarative memories in a model of hippocampal-neocortical interactions. Nat. Neurosci., 7, 286–294.
McClelland, J. L., McNaughton, B. L., & O'Reilly, R. C. (1995). Why there are complementary learning systems in the hippocampus and neocortex. Psychol. Rev., 102, 419–457.
McCloskey, M., & Cohen, N. J. (1989). Catastrophic interference in connectionist networks. Psychol. Learn. Motiv., 24, 109–165.
Pfeiffer, B. E. (2020). The content of hippocampal “replay”. Hippocampus, 30, 6–18.
Sun, W., Advani, M., Spruston, N., Saxe, A., & Fitzgerald, J. E. (2023). Organizing memories for generalization in complementary learning systems. Nat. Neurosci., 26, 1438–1448.
Sweegers, C. C. G., et al. (2014). Neural mechanisms supporting the extraction of general knowledge across episodic memories. J. Neurosci., 34, 7936–7944.
Ziv, Y., et al. (2013). Long-term dynamics of CA1 hippocampal place codes. Nat. Neurosci., 16, 264–266.
Siguiente clase: ¿mapas espaciales o algo más? Mapas cognitivos
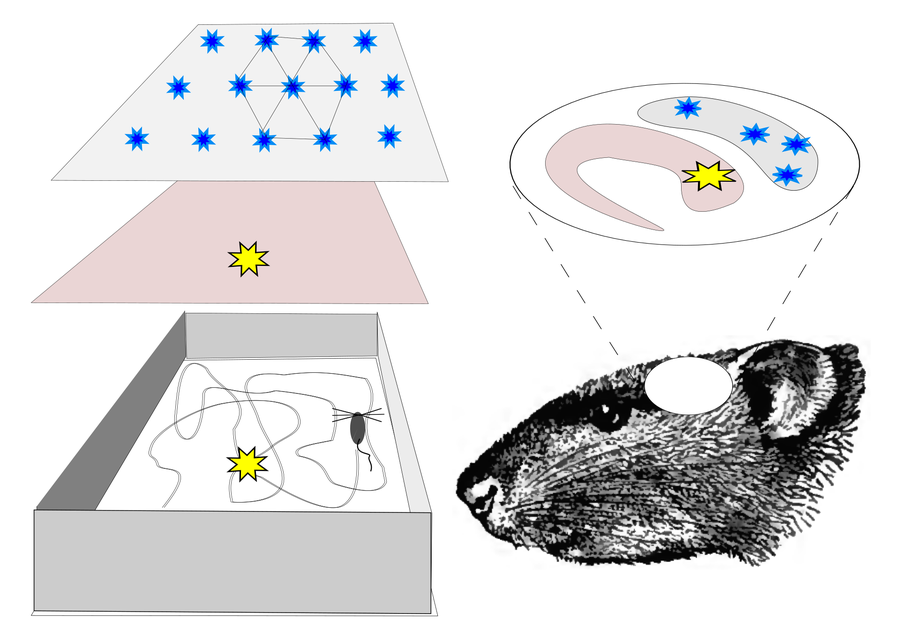
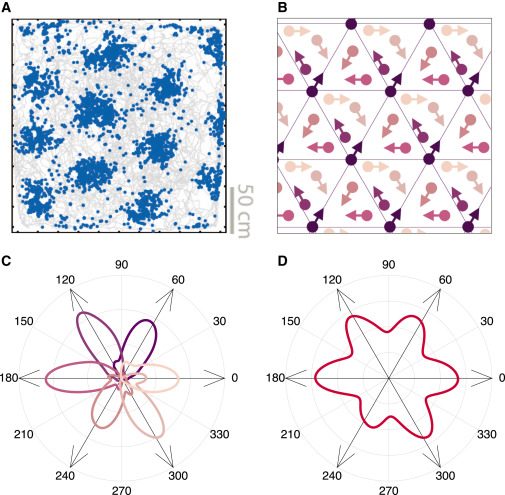
Place cells: posición (y dirección). Grid cells: una retícula hexagonal que cubre el ambiente. Head direction y border cells
¿Un GPS… o un sistema de coordenadas para cualquier cosa que tenga estructura?
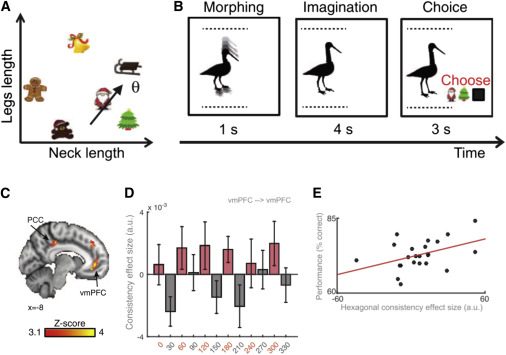
Mapas cognitivos de espacios abstractos: aves que cambian de cuello y de patas